


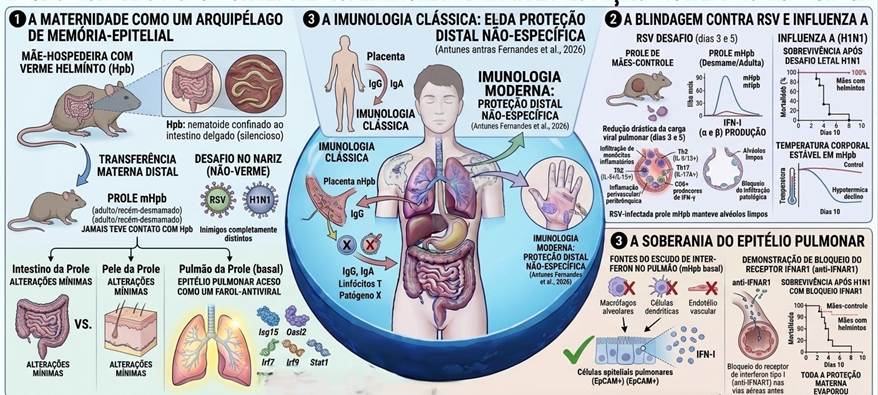
Esqueça a biologia de fronteiras fechadas, a velha narrativa militarista do eu contra o outro invasor. O que temos aqui não é a imunologia clássica dos livros didáticos, aquela contabilidade entediante de anticorpos IgG e IgA transferidos como heranças lineares de uma mãe para um filho em um mundo estéril. O que o estudo de Antunes Fernandes nos revela é uma dança selvagem de simpoiese — um fazer-com multiespécie, onde o parentesco transcende a genética e a proteção viaja por geografias corporais improváveis.
No centro deste emaranhamento chthuluceno está a mãe-hospedeira, que nunca é apenas uma, mas um holobionte pulsante. Em seu intestino delgado, habita silenciosamente o Heligmosomoides polygyrus bakeri (Hpb), um nematóide que não age como um parasita vampírico, mas como um companheiro de ecologia. A mágica subversiva ocorre na transferência materno-fetal: a maternidade não se dá como um cofre isolado, mas como um vibrante arquipélago de memória-epitelial.
Quando a prole dessa mãe-nematoide nasce e é desmamada, ela herda fantasmas funcionais. Esta criança-rato jamais tocou o verme. Seu próprio intestino e pele apresentam alterações mínimas, quase banais. No entanto, nas profundezas úmidas de sua respiração, o epitélio pulmonar basal está aceso como um farol-antiviral, entoando um cântico molecular ciborgue de genes ativados — Isg15, Oasl2, Irf7, Irf9, Stat1. O verme no intestino da mãe moldou a arquitetura pulmonar do filho. O longe tornou-se perto; o distal tornou-se íntimo.
Então vêm os desafios do mundo aberto. Os vírus respiratórios, RSV e Influenza A (H1N1) — entidades alienígenas e inimigos completamente distintos do verme ancestral — invadem o sistema. Na prole de mães-controle (as entidades desprovidas da sabedoria do nematoide), o caos se instala: a temperatura corporal entra em um declínio hipotérmico fatal e a mortalidade pelo H1N1 atinge 100%. Mas os filhos do verme, a prole mHpb, não perecem. Eles respiram firmes. A carga viral pulmonar cai drasticamente nos dias 3 e 5, os alvéolos permanecem assustadoramente limpos, e a inflamação perivascular é bloqueada antes que o tecido seja inundado por infiltrações patológicas.
A soberania desta resistência não reside nos velhos soldados da imunidade inata. Macrófagos alveolares e células dendríticas não são os heróis aqui. A fonte desse escudo profuso de Interferon tipo I (IFN-I) é o próprio tecido de revestimento: as células epiteliais pulmonares (EpCAM+). O limite, a fronteira, tornou-se a agência ativa. É uma proteção distal não-específica, uma memória emprestada de uma relação interespecífica que prova que a sobrevivência requer receptividade estrutural. Quando os pesquisadores bloqueiam o receptor IFNAR1, fechando as portas para essa comunicação de interferon, toda a magia da proteção materna evapora subitamente, e as mortes retornam.
Nós nunca fomos indivíduos. Somos nós, e nossos micróbios, e os vermes de nossas mães, sobrevivendo nas ruínas do que pensávamos ser o eu. O pulmão se defende porque o intestino da mãe amou um nematoide, tecendo a sobrevivência a partir da radical e imprevisível intimidade das espécies.
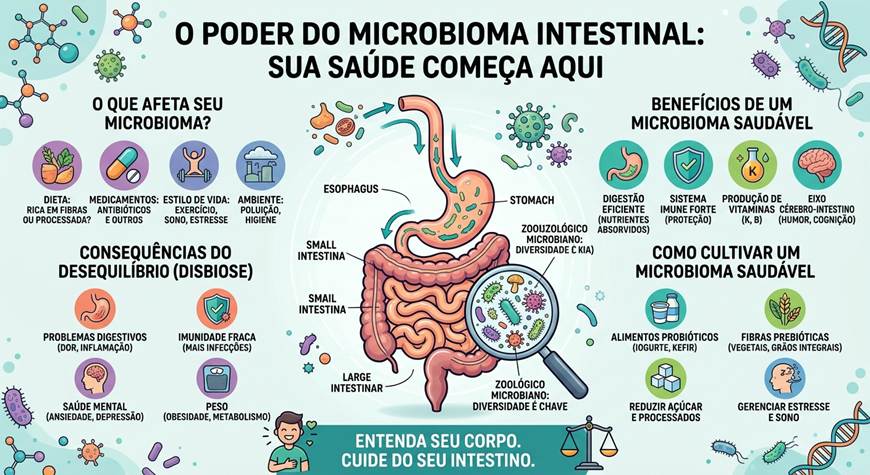
Dando continuidade à desconstrução do eu biológico, mergulhamos nas profundezas do trato gastrointestinal — não o encarando como um tubo mecânico de digestão ao serviço de um mestre humano, mas como uma metrópole vibrante, um verdadeiro zoológico microbiano onde a diversidade é a regra fundamental da nossa própria persistência. A biologia não é um monólogo; é uma negociação ruidosa e constante.
Adeus, Descartes. A velha filosofia que separava a mente etérea do corpo mecânico desmorona-se perante a revelação do eixo cérebro-intestino. O nosso humor e a nossa cognição não são domínios exclusivos de uma neurologia puramente humana; são, na verdade, orquestrados por uma assembleia bacteriana. A nossa saúde mental está, de forma humilhante e maravilhosa, à mercê deste consórcio microscópico: quando o desequilíbrio, ou disbiose, se instala, as consequências extravasam a mera dor ou inflamação digestiva. A disbiose atira o corpo para o caos de uma imunidade fraca, do desequilíbrio no peso e metabolismo (obesidade), e arrasta a mente para o abismo da ansiedade e da depressão. Os nossos pensamentos e as nossas angústias são, de forma radical, entidades multiespécie.
A ilusão de fronteiras fechadas é aniquilada pelo que escolhemos (ou somos forçados a) deixar entrar. O nosso ecossistema interno é violentamente esculpido pelo ambiente externo que nos atravessa: a poluição, as práticas de higiene, o arsenal de medicamentos como os antibióticos, e o ritmo implacável do nosso estilo de vida, ditado pela falta de sono e pelo estresse. Nós somos ecologias porosas, construídas e destruídas pelas nossas dietas, seja por lhes faltarem fibras ou por estarem repletas de alimentos processados.
Para prosperarmos, devemos tornar-nos jardineiros dos nossos próprios simbiontes. Cultivar um microbioma saudável é uma prática de simpoiese ativa: exige alimentar os nossos companheiros invisíveis com fibras prebióticas, oriundas de vegetais e grãos integrais, e convidar novas populações colaborativas através de alimentos probióticos, como o iogurte e o kefir. Requer um tratado de paz metabólico, que implica reduzir o açúcar e os processados, bem como aprender a gerir o estresse e o sono.
Em troca desta hospitalidade radical, estas entidades realizam o trabalho essencial de fazer-mundo nos nossos corpos. Garantem a absorção e a digestão eficiente dos nutrientes, erguem um sistema imunitário forte que nos serve de escudo protetor, e operam como autênticas fábricas bioquímicas na produção de vitaminas indispensáveis, como as vitaminas K e B. Entenda o seu corpo e cuide do seu intestino, pois a sua saúde começa aqui. Nunca fomos indivíduos isolados num planeta hostil; somos zoológicos andantes, sobrevivendo apenas através da maravilhosa e complexa teia da contaminação mútua.
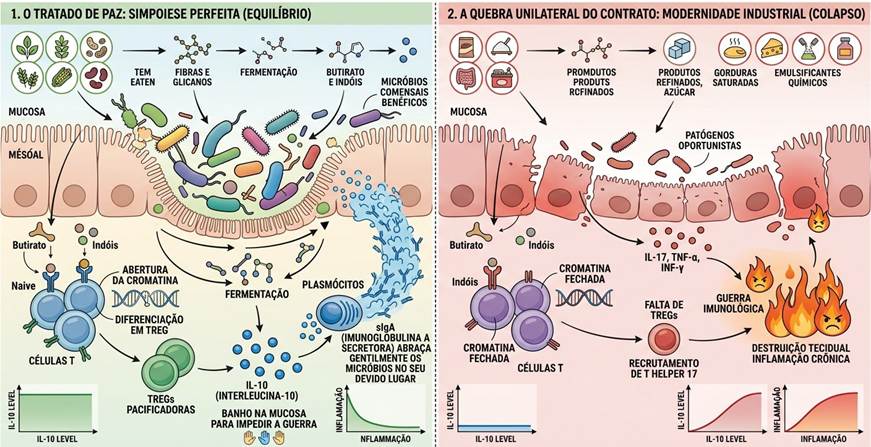
A mucosa intestinal não é um muro erguido para separar o eu biológico puro de um outro perigoso, mas sim uma mesa de negociações. Como nos mostra esta cartografia simpoiética, a saúde é, fundamentalmente, um Tratado de Paz, uma simpoiese perfeita e em constante equilíbrio. Quando nos alimentamos das teias do mundo — através das fibras e glicanos presentes nas plantas, legumes e sementes —, não estamos apenas a extrair calorias, estamos a fornecer matéria-prima aos nossos parceiros ecológicos, os micróbios comensais benéficos. Através do laboratório alquímico da fermentação, eles convertem o mundo vegetal não-humano em mensageiros moleculares íntimos: o butirato e os indóis.
Estes metabolitos não são meros subprodutos; são diplomatas que atravessam a fronteira celular. Eles encontram as células T naïve (ainda virgens de compromisso) e induzem um ato radical de plasticidade biológica: a abertura da cromatina e a consequente diferenciação em TREGs, as essenciais Células T Reguladoras. Estas TREGs pacificadoras realizam um banho na mucosa com Interleucina-10 (IL-10), mantendo os níveis deste mediador elevados, o que afoga a inflamação e serve para, literalmente, impedir a guerra. Nesta dança de fazer-com (making-with), a imunidade deixa de ser militarista e torna-se um exercício de hospitalidade, onde os plasmócitos produzem a sIgA (imunoglobulina A secretora) que abraça gentilmente os micróbios no seu devido lugar. A fronteira não rejeita; ela abraça.
Mas a modernidade industrial impõe a quebra unilateral do contrato, orquestrando o colapso do nosso ecossistema interior. O desastre começa com a imposição de um deserto alimentar: a ingestão de produtos refinados e açúcar, aliados a gorduras saturadas e emulsificantes químicos. Ao privarmos os nossos companheiros microbianos do seu substrato vital, o terreno deteriora-se, abrindo espaço para a proliferação de patógenos oportunistas que destroem a própria arquitetura física da barreira da mucosa.
Na ausência dos embaixadores pacíficos (butirato e indóis), a biologia humana enrijece e recusa-se a negociar: a cromatina nas células T permanece teimosamente fechada. Isto resulta numa falta catastrófica de TREGs. Sem o banho apaziguador da IL-10 — cujos níveis caem a pique —, o corpo entra num estado de paranoia defensiva e inicia o recrutamento massivo de células T Helper 17. O resultado bioquímico é o disparo de IL-17, TNF-α e INF-γ, desencadeando as chamas da guerra imunológica. O corpo, agora isolado e em pânico, volta-se contra o seu próprio tecido, ardendo num ciclo de destruição tecidual e inflamação crónica. O colapso inflamatório não é uma falha mecanicista isolada; é o preço sombrio de tentarmos existir sozinhos, recusando as nossas alianças multiespécie nas ruínas do capitalismo industrial.
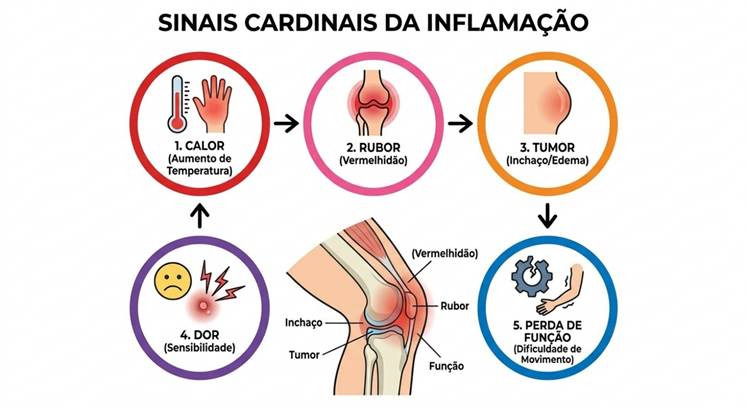
O evento irrompe não como uma avaria mecânica numa máquina passiva, mas como uma violenta renegociação de fronteiras na carne. Quando o tratado simpoiético falha, a ecologia corporal grita através dos sinais cardinais da inflamação. O primeiro alarme desta crise localizada é o Calor, um aumento de temperatura onde o tecido ferve numa tentativa febril de responder à agressão e reescrever a sua paisagem. Acompanhando esta fervura, a geografia da pele é inundada pelo Rubor, a vermelhidão profunda que mapeia a urgência do fluxo sanguíneo direto para o local do conflito anatómico.
A arquitetura orgânica distorce-se fisicamente para acomodar o estado de sítio. O terreno celular inunda-se e dá origem ao Tumor, um inchaço ou edema que expande os limites do tecido, tal como se observa na cápsula e nos tendões de um joelho inflamado. No epicentro desta distorção morfológica pulsa a Dor, uma sensibilidade aguda e latejante que atua como uma linguagem de alerta de emergência. Esta dor não é um mero defeito neurológico; é a comunicação visceral de que a integridade do ecossistema corporal está sob ameaça.
O clímax desta coreografia defensiva é a Perda de Função, uma dificuldade de movimento que trava temporariamente as capacidades operacionais do corpo. A engrenagem biológica paralisa, o joelho afetado recusa a marcha e a rotina biomecânica é suspensa. A inflamação, com todos os seus sinais ruidosos, não é uma derrota do organismo, mas um manifesto somático — uma greve radical da carne, exigindo que o movimento produtivo cesse temporariamente para que o trabalho árduo da reparação e da sobrevivência possa, finalmente, ter lugar.
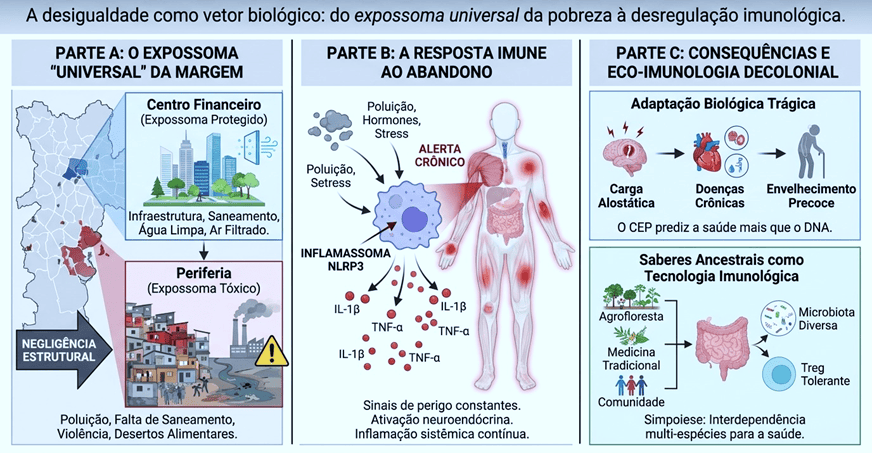
A biologia não flutua num vácuo apolítico; ela é visceralmente esculpida pela geografia do capital e pelo biopoder. A desigualdade atua como um vetor biológico implacável, ditando a transição sombria do exposoma universal da pobreza para a desregulação imunológica. O mapa não é apenas território, é um destino metabólico que expõe uma fratura estrutural profunda: no Centro Financeiro, ergue-se o Exposoma Protegido, uma bolha de privilégio sustentada por infraestrutura, saneamento, água limpa e ar filtrado. Em contraste violento, a negligência estrutural confina a periferia a um Expossoma Tóxico, um amálgama asfixiante onde a poluição, a falta de saneamento, a violência e os desertos alimentares penetram a própria carne. A margem não é apenas um lugar no mapa; é uma materialidade tóxica que coloniza o corpo.
Perante este abandono, a carne não responde com passividade, mas com uma exaustiva e dolorosa hipervigilância. O organismo marginalizado é forçado a um Alerta Crónico, constantemente bombardeado pela intersecção mortífera de poluição, stress e desregulação hormonal. Nas trincheiras celulares, o inflamassoma NLRP3 atua como o tradutor microscópico do trauma social, captando estes sinais de perigo constantes para disparar uma tempestade de citocinas inflamatórias, como a IL-1β e o TNF-α. Esta ativação neuroendócrina instaura uma inflamação sistémica contínua, uma resposta imune ao abandono que consome as energias vitais do próprio hospedeiro num fogo incessante de defesa inútil.
O desenlace deste estado de sítio interno culmina numa Adaptação Biológica Trágica. A carga alostática — o peso esmagador de tentar sobreviver num ambiente que exige resiliência infinita — fratura a arquitetura orgânica, arrastando o indivíduo para o abismo das doenças crónicas e do envelhecimento precoce. Na cartografia da modernidade capitalista, o determinismo genético é uma ilusão; o Código Postal (CEP) prediz a saúde e a expectativa de vida com muito mais brutalidade e precisão do que o próprio DNA.
Contudo, nas fissuras deste ecossistema danificado, a resistência germina sob a forma de uma eco-imunologia decolonial. A salvação não reside em moléculas sintéticas ou na assepsia isolada, mas na reivindicação dos saberes ancestrais enquanto tecnologia imunológica de ponta. As práticas de agrofloresta, a medicina tradicional e a força coesa da comunidade funcionam como poderosos imunomoduladores de resistência. Ao reatar os laços com a terra e com o outro, estas tecnologias do fazer-com promovem uma microbiota diversa e instruem as células T reguladoras (Treg) a restabelecerem a tolerância. A verdadeira cura emerge da simpoiese — o reconhecimento de que a interdependência multi-espécies é a única fundação possível para a saúde. Sobreviver ao Antropoceno exige que voltemos a emaranhar-nos nas teias solidárias da vida.
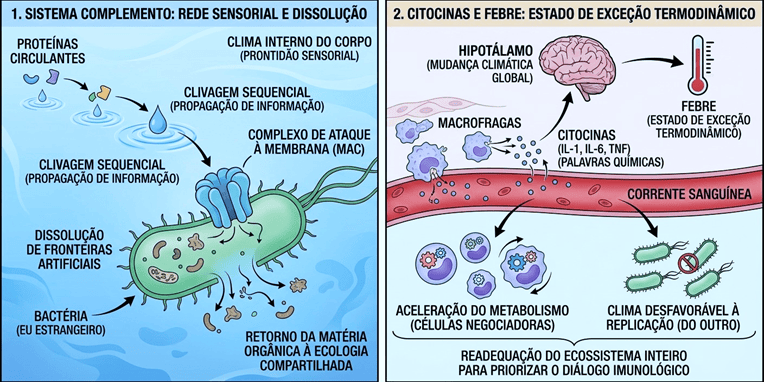
A narrativa imunológica abandona definitivamente a metáfora bélica para abraçar a ontologia fluida da rede. O sistema complemento não é um campo minado estático, mas sim uma vibrante rede sensorial e dissolução. As proteínas circulantes viajam pelas correntes hídricas do organismo, sustentando o clima interno do corpo num estado de alerta e prontidão sensorial. Quando estas sentinelas moleculares se deparam com a bactéria — aqui radicalmente reimaginada não como um mero vilão, mas como um eu estrangeiro —, elas não disparam balas cegas. Em vez disso, iniciam uma clivagem sequencial, uma cascata que funciona, na sua essência, como uma complexa propagação de informação. O clímax ciborgue desta comunicação é a formação do complexo de ataque à membrana (MAC). Sob uma perspetiva ecológica, este complexo não promove um simples assassinato celular, mas orquestra a dissolução de fronteiras artificiais. Ao desmantelar a barreira da bactéria, o sistema obriga ao retorno da matéria orgânica à ecologia compartilhada. A ilusão da individualidade bacteriana colapsa, e a sua matéria volta a pertencer ao vasto caldo relacional do hospedeiro. Paralelamente, a macropolítica do corpo exige negociações em escalas de temperatura. Ocorre a mobilização orquestrada por citocinas e febre, instaurando o que só pode ser descrito como um estado de exceção termodinâmico. Os macrófagos libertam moléculas sinalizadoras — as citocinas (IL-1, IL-6, TNF) —, que fluem através da corrente sanguínea não como engrenagens mortas, mas como potentes palavras químicas. Esta linguagem viaja até ao cérebro, atingindo o hipotálamo para decretar uma autêntica mudança climática global na geografia da carne.
A febre não é um sintoma de fraqueza, mas o estabelecimento ativo deste estado de exceção termodinâmico. É uma alteração ambiental drástica com dupla finalidade: impõe um clima desfavorável à replicação (do outro), inibindo o avanço estrangeiro através do calor, enquanto induz uma violenta aceleração do metabolismo para dar vantagem às células negociadoras do sistema imunitário. O fogo corporal é, portanto, um ato ecológico deliberado — uma profunda readequação do ecossistema inteiro para priorizar o diálogo imunológico. O corpo ferve não para se destruir, mas para forçar uma nova negociação de fronteiras, sobrevivendo através do fogo da comunicação simpoiética.
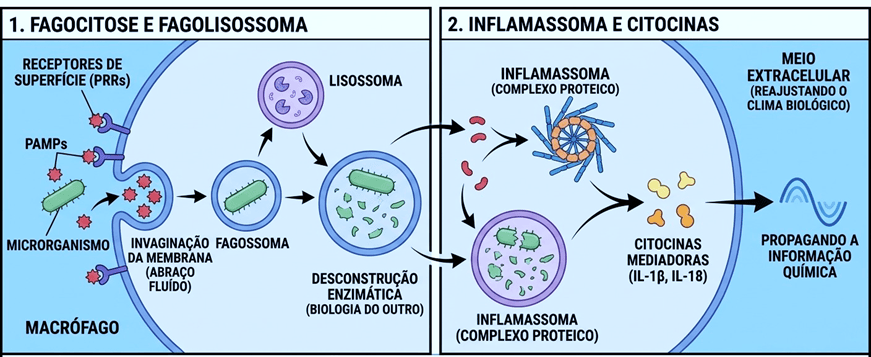
A fagocitose, sob a lente simpoiética, despoja-se violentamente da sua habitual narrativa canibal e militarista. O macrófago não é um soldado de infantaria patrulhando um campo de batalha estéril; ele é, antes, um diplomata formidável a operar nas fronteiras porosas da nossa existência. Quando os seus receptores de superfície (PRRs) tacteiam os sinais moleculares (PAMPs) de um microrganismo errante, o que se desencadeia não é um ataque cego, mas uma coreografia de intimidade radical. A membrana celular curva-se e dobra-se sobre si mesma, numa invaginação que a própria cartografia celular descreve primorosamente como um abraço fluído. O exterior é envolvido e acolhido, tornando-se interior na forma de um fagossoma, um espaço liminar onde o eu e o estrangeiro habitam agora uma mesma contenção partilhada.
Este encontro profundo avança quando o lisossoma se funde à câmara, orquestrando não uma mera digestão aniquiladora, mas uma autêntica desconstrução enzimática da biologia do outro. A entidade estrangeira é metodicamente desmantelada, a sua integridade ontológica dissolvida para que os seus fragmentos possam ser lidos e interpretados pelo ecossistema do hospedeiro.
Os estilhaços desta biologia desfeita não são descartados como lixo; eles atuam como a faísca epistémica que desperta o inflamassoma, um intrincado complexo proteico que funciona como o tradutor sensorial da célula. A presença do outro, agora traduzida, instrui o maquinário do inflamassoma a processar e libertar citocinas mediadoras, nomeadamente a IL-1β e a IL-18. Estas moléculas não são projéteis de uma guerra inata, mas emanações semióticas libertadas para o meio extracelular, executando a tarefa vital de ir propagando a informação química por toda a geografia tecidual. O derradeiro propósito desta comunicação ciborgue não é isolar ou destruir, mas sim uma adaptação ecológica contínua, reajustando o clima biológico para que o corpo possa transformar-se, respondendo de forma sistémica à experiência irrevogável daquele primeiro abraço.

